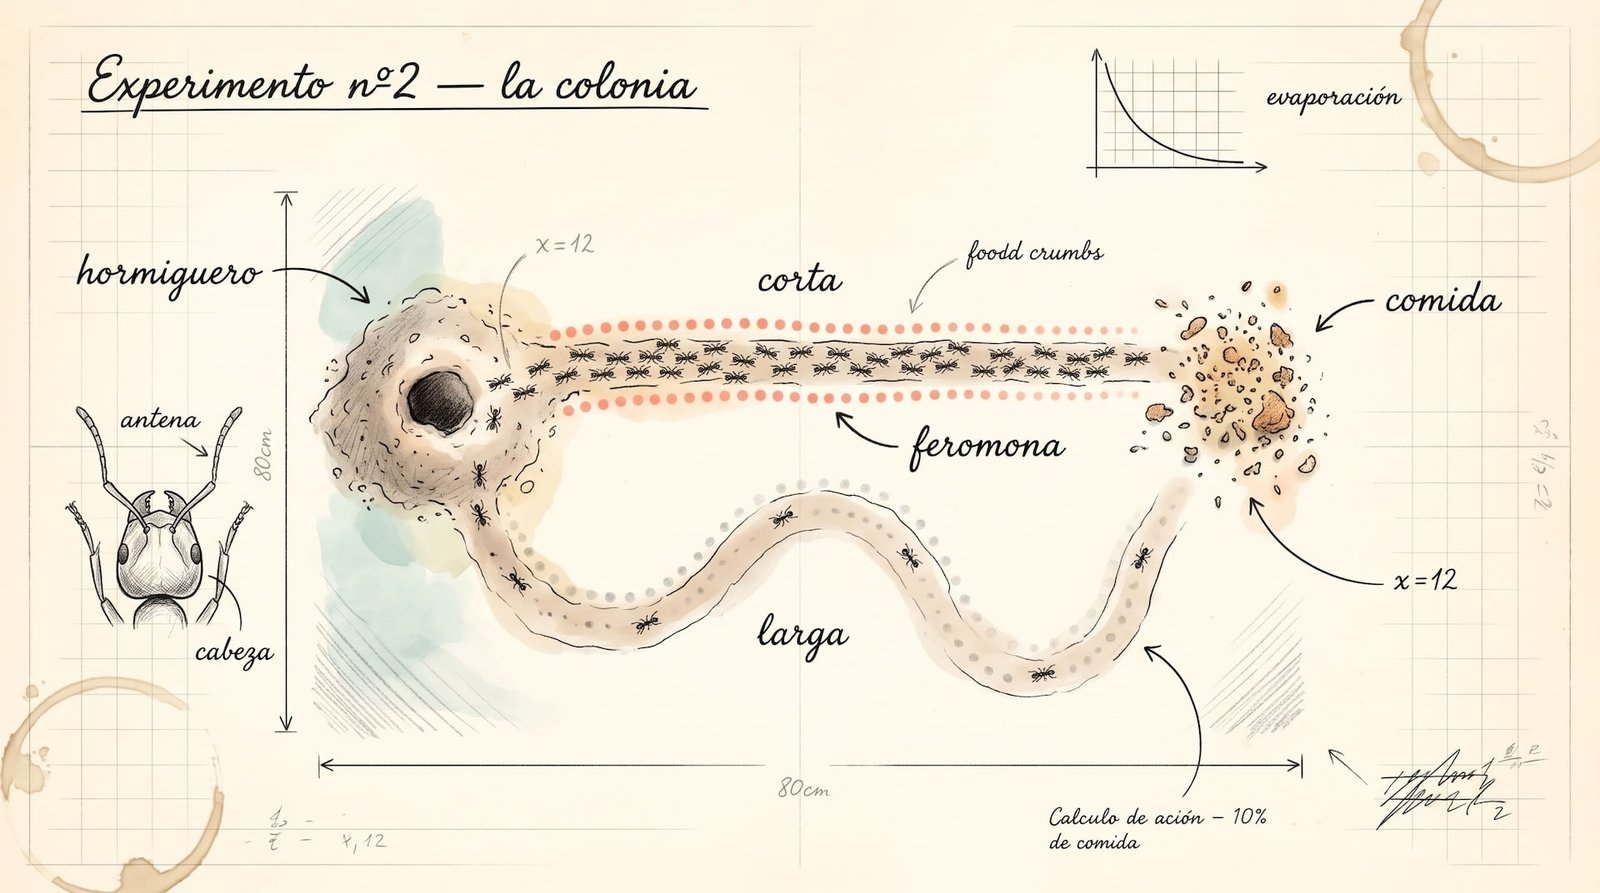
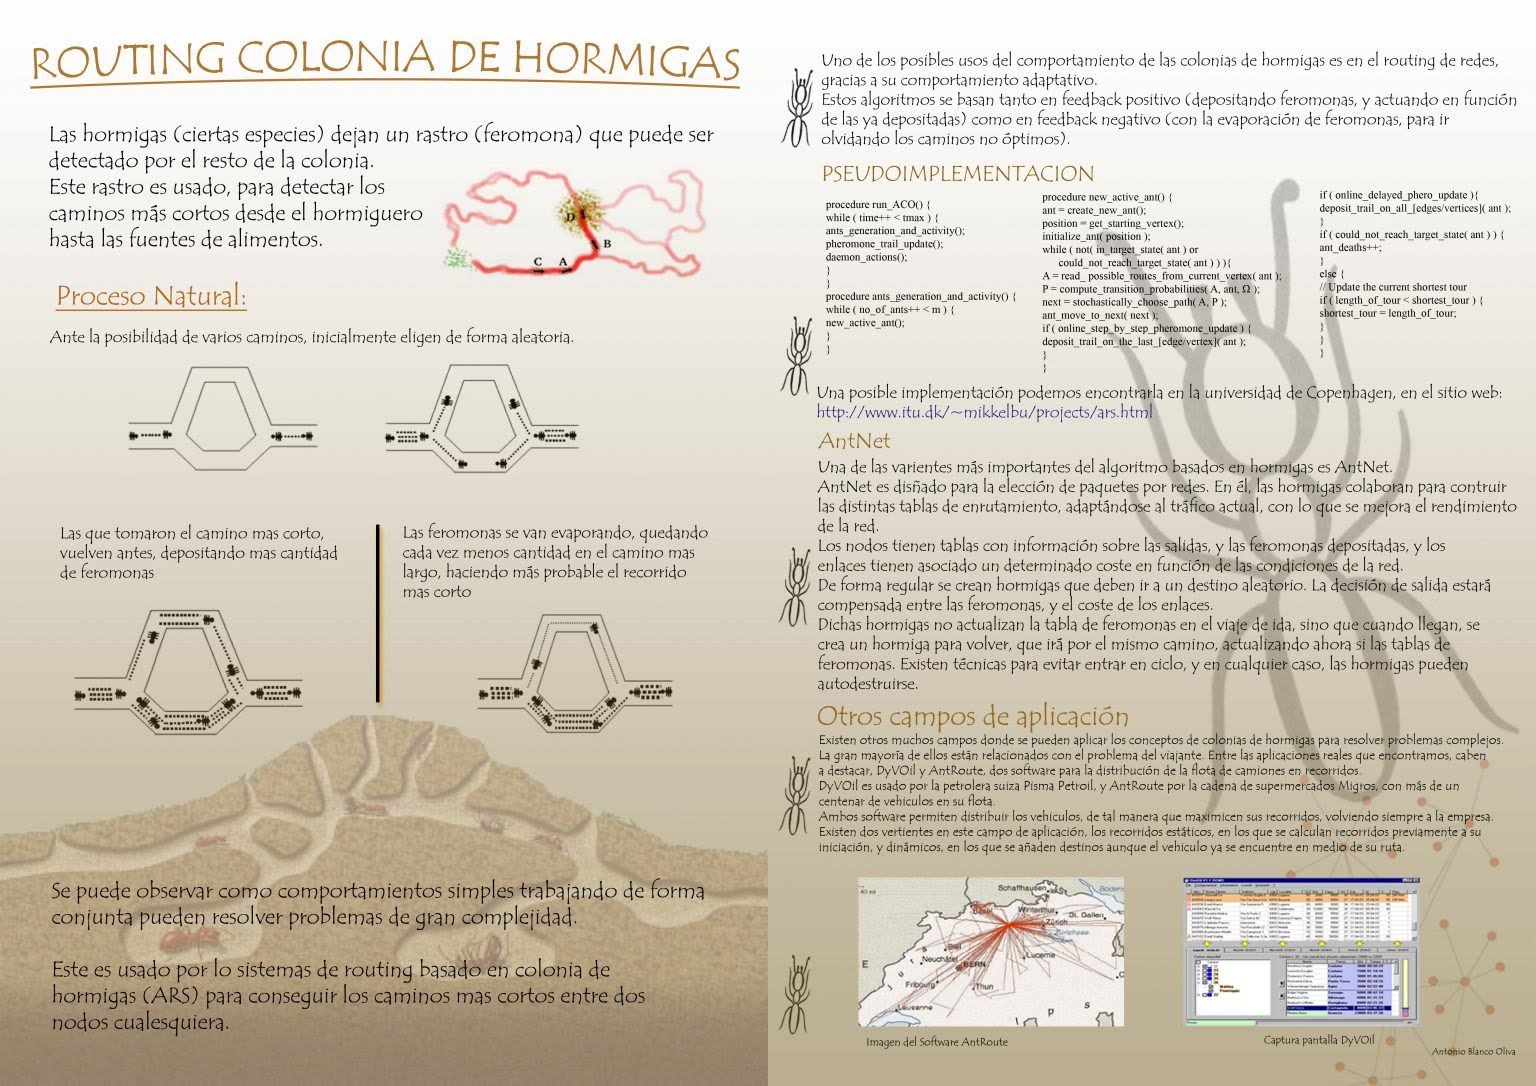
En la carrera, en la Universidad de Málaga, me tocó hacer un póster sobre routing con colonias de hormigas. Lo dibujé a mano: dos caminos entre el hormiguero y la comida, puntitos de feromona, y la idea de que las hormigas acaban eligiendo el corto sin que nadie se lo diga. En 2019 escribí una primera versión de este post y colgué el póster.
Aquel póster era un dibujo estático. Esta vez quería verlo ocurrir: poner 150 hormigas en un puente doble, medir cuántas van por cada rama, quitarles reglas para ver qué se rompe y, al final, usar el mismo algoritmo para algo que me importa como builder: calcular rutas de reparto.
Si leíste el post de la pecera, el planteamiento te sonará:
- Sin LLMs ni redes neuronales. Solo reglas sencillas copiadas de la biología.
- JavaScript puro, sin dependencias, unas 1200 líneas.
- El mismo código corre en el navegador y en Node, y todos los números del post salen de mediciones con semilla que puedes repetir.
1. El problema: unos bichos casi ciegos encuentran el camino más corto
Muchas especies de hormigas apenas ven. No tienen mapa, ni GPS, ni ninguna hormiga que sepa dónde está todo. Y aun así, una colonia es capaz de encontrar el camino más corto entre el hormiguero y la comida, y de cambiarlo si algo se lo corta.
El truco no está en ninguna hormiga. Está en el suelo.
2. Estigmergia: hablar escribiendo en el entorno
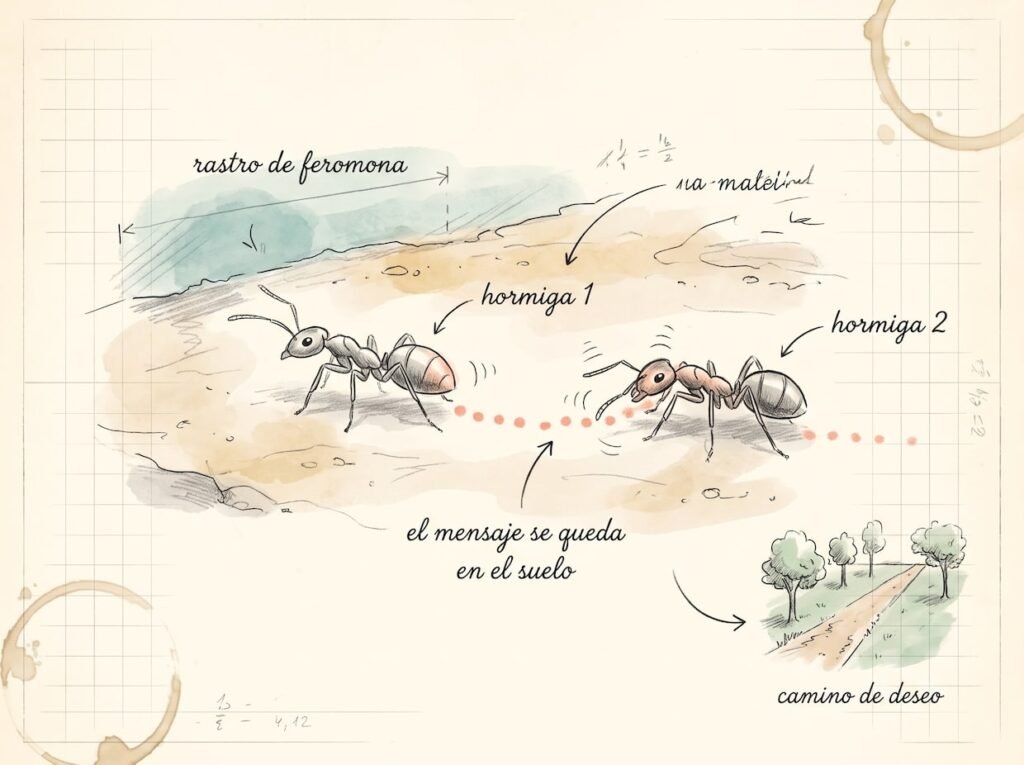
Las hormigas sueltan feromona, una sustancia química que las demás huelen con las antenas. Cuando una hormiga encuentra comida, vuelve a casa dejando rastro; las que salen después tienden a seguir el rastro más fuerte.
A esto se le llama estigmergia (Grassé, 1959, estudiando termitas): los individuos no se hablan entre sí, modifican el entorno y el entorno les dice a los demás qué hacer. La feromona funciona como una memoria compartida que no está dentro de ninguna hormiga.
Si te suena a algo, es porque los humanos hacemos lo mismo: los caminos de deseo que aparecen en el césped de los parques son estigmergia pura. Nadie los diseña; cada persona que pasa los marca un poco más.
En la simulación, el suelo es una rejilla de celdas de 4 px con dos capas de feromona:
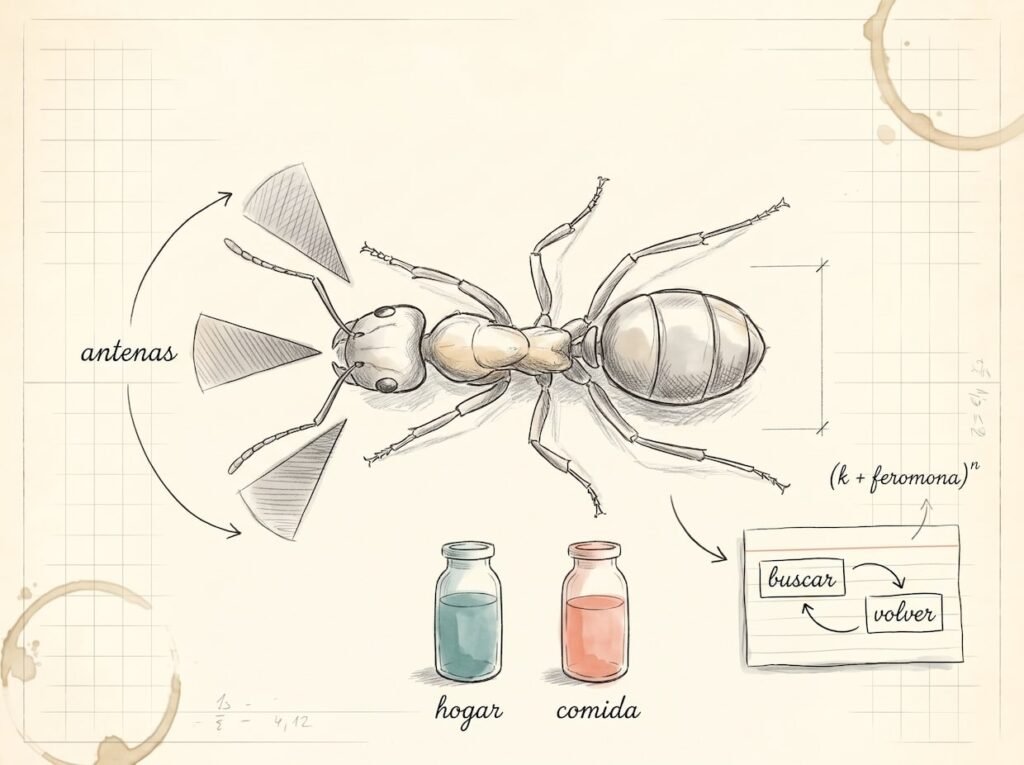
- hogar (azul): la dejan las hormigas que buscan comida. Significa «por aquí se vuelve a casa».
- comida (roja): la dejan las que vuelven cargadas. Significa «por aquí hay comida».
Cada hormiga sigue una y deja la otra. Así se forma un circuito de ida y vuelta sin que nadie tenga el plano.
3. Una hormiga por dentro
Cada hormiga tiene muy poco:
- Dos estados:
buscarovolver(cargada). - Tres antenas: huelen la feromona un poco por delante, a la izquierda, al centro y a la derecha.
- Un reloj: cuánto tiempo lleva desde que salió del hormiguero o de la comida.
Cada frame hace cuatro cosas:
oler → elegir antena → moverse → dejar rastroElegir: la regla de Deneubourg
La pregunta clave es: si la antena izquierda huele 3 y la derecha 1, ¿a dónde voy? La respuesta obvia («a la que más huele») funciona peor de lo que parece. Los biólogos que estudiaron el puente doble propusieron una regla probabilística, y es la que uso:
// Cada antena pesa (k + feromona)^n. Con exploración se sortea con esos
// pesos; sin ella, siempre la más fuerte.
const w = offsets.map((o) => {
  const sx = this.x + Math.cos(this.heading + o) * d;
  const sy = this.y + Math.sin(this.heading + o) * d;
  if (world.isWall(sx, sy)) return 0;
  return (ANT.choiceK + world.phero.sample(layer, sx, sy, ANT.sensorSize)) ** ANT.choiceN;
});kes el umbral: con poca feromona, todas las opciones pesan parecido y la hormiga deambula. Es su curiosidad.nes lo tajante que es la decisión: conn = 3, una antena que huele el doble no pesa el doble, pesa ocho veces más.
Dejar rastro: cuanto más lejos, más débil
const fresh = brain.rastroDistancia ? Math.exp(-this.since / ANT.trailTau) : 1;
world.phero.add(lay, this.x, this.y, ANT.deposit * fresh);
Una hormiga que acaba de salir de la comida deja un rastro fuerte; una que lleva 30 segundos dando vueltas, uno flojito. Esto hace que la feromona codifique la distancia: cuanto más fuerte huele, más cerca está el origen.
El suelo: lo más fresco, más un extra por tráfico
Aquí me pasé un buen rato midiendo, y es de lo más interesante que he aprendido con este proyecto:
// Cada celda guarda el rastro más fresco que ha recibido (así marca «a qué
// distancia queda el origen») más un pequeño extra por cada paso (tráfico)
L[i] = Math.min(PHERO.max, Math.max(L[i], amount) + amount * PHERO.traffic);- Con depósito solo sumado («cada hormiga añade lo suyo»), el puente funcionaba, pero en campo abierto no se formaban caminos. La feromona acababa diciendo «por aquí pasa mucha gente» y no «por aquí se llega».
- Con solo el más fresco, el campo abierto iba de lujo, pero en el puente la colonia no se decidía nunca (~40 %). Sin el extra por tráfico no hay refuerzo positivo: que vayan más hormigas no hace el camino más atractivo.
- La mezcla, lo más fresco más un 2 % por cada paso, funciona en los cuatro escenarios.
Olvidar: la evaporación
// Evaporación exponencial: cada celda pierde la misma fracción por segundo
const f = Math.exp(-PHERO.evaporation * dt);
for (let i = 0; i < hogar.length; i++) {
  hogar[i] *= f;
  comida[i] *= f;
}
Un 5 % por segundo. Parece un detalle, pero en la sección 5 verás que sin olvido no hay inteligencia.
4. El puente doble, en vivo
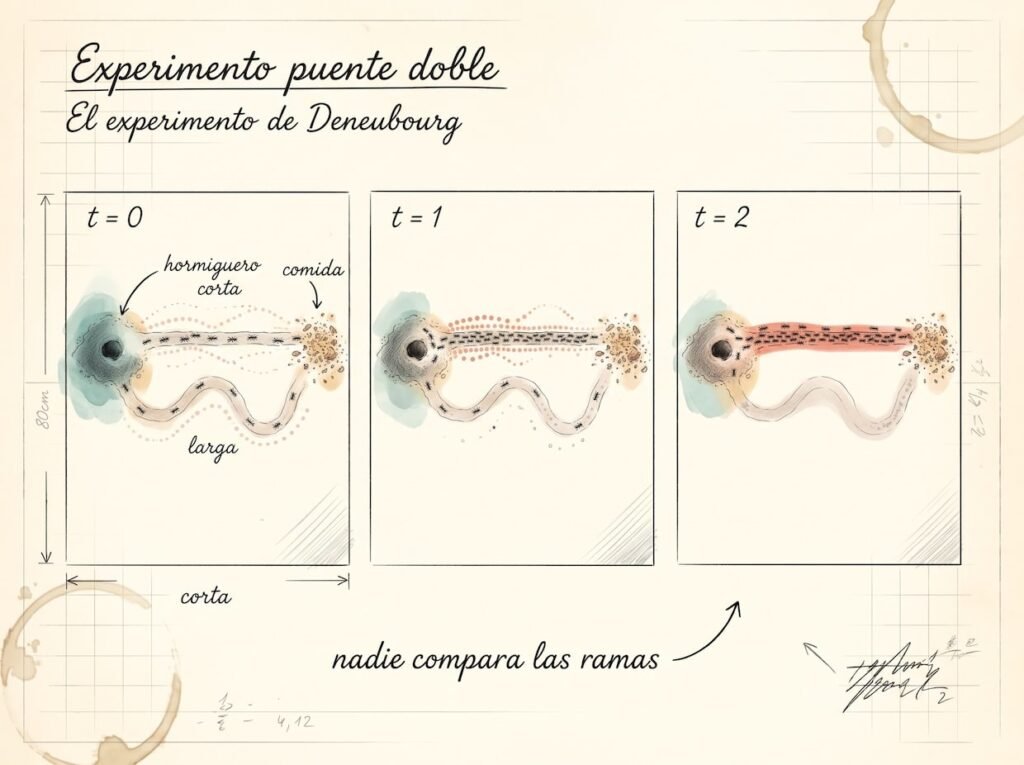
Este es el experimento de mi póster, que en realidad es un clásico de la biología: Deneubourg y Goss, finales de los 80, con hormigas argentinas. Dos caminos entre el hormiguero y la comida. En mi versión, la rama larga mide 1,65 veces la corta.
Lo que pasa, tal y como lo dibujé en el póster:
- Al principio eligen al azar. Más o menos mitad y mitad.
- Las de la rama corta vuelven antes. Su rastro llega antes al hormiguero, y además es más fresco.
- Las que salen después encuentran algo más de feromona en la corta. Unas pocas más eligen la corta, que se refuerza más…
- Y la larga se va olvidando por evaporación.
Esto es lo que mide el simulador (10 semillas, 150 hormigas):
| Tiempo | 30 s | 1 min | 2 min | 4 min |
|---|---|---|---|---|
| % de hormigas en la rama corta | 47 % | 93 % | 100 % | 99 % |
Al minuto ya van casi todas por la corta. Nadie ha comparado las dos ramas. Ninguna hormiga sabe que hay dos ramas.
5. Quitarle reglas a la colonia
Como en la pecera, cada regla se puede apagar con un botón. Y lo interesante es ver qué se rompe.
Sin evaporación: una colonia que no se decide
| En la rama corta (4 min) | Entregas por minuto | |
|---|---|---|
| Todo activado | 99 % | 242 |
| Sin evaporación | 51 % | 151 |
Sin olvido, las dos ramas se acaban llenando de feromona hasta el tope y la feromona deja de informar: huele igual de fuerte por todas partes. La colonia se queda repartida a medias y trae un 40 % menos de comida.
Es contraintuitivo: olvidar es lo que permite decidir. Un sistema que lo recuerda todo con la misma fuerza no distingue lo importante.
Sin rastro con distancia: 69 %
Si todas dejan el mismo rastro, da igual lo lejos que estén de la comida. La rama corta gana igualmente por tráfico, pero mucho más despacio: 69 % a los 4 minutos.
Sin exploración: más rápida… y más tonta
Aquí viene lo bueno. Si las hormigas van siempre a la antena que más huele (sin azar):
| Rama corta a 1 min | Entregas/min | |
|---|---|---|
| Todo activado | 93 % | 242 |
| Sin exploración | 100 % | 320 |
¡Funciona mejor! Hasta que cambias el mundo.
6. El atajo tardío: el precio de no explorar
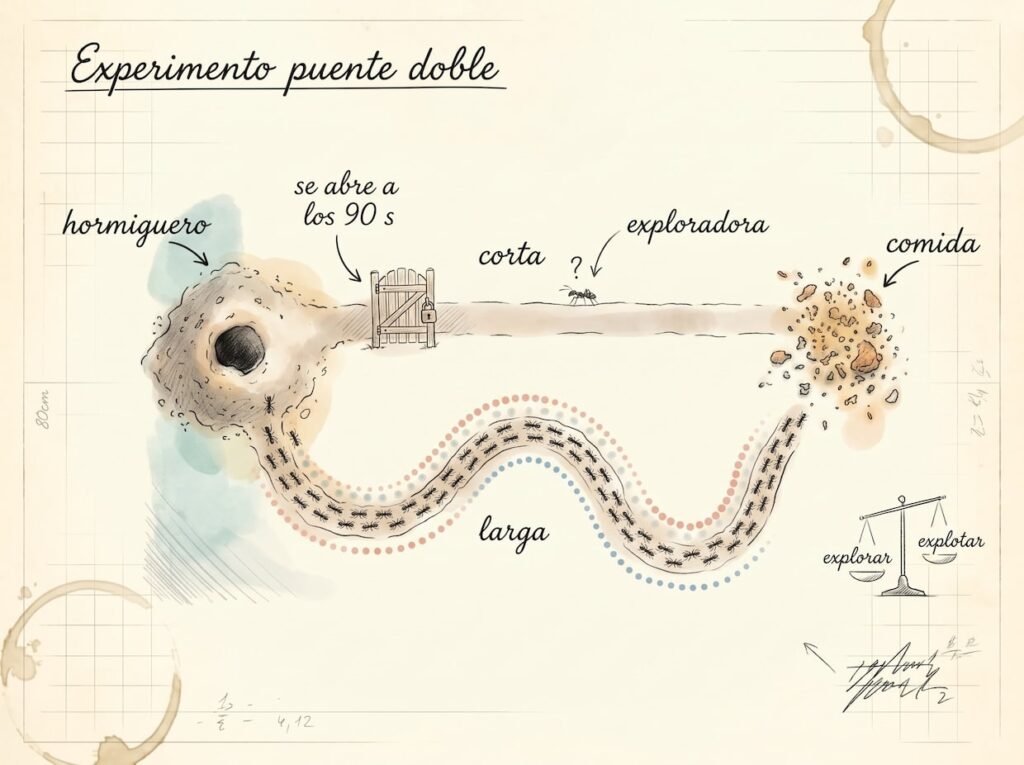
Segundo experimento: al principio solo existe la rama larga. A los 90 segundos, cuando la colonia ya tiene su camino, se abre el atajo.
Medido a los 7 minutos, 10 semillas:
| Variante | En la corta | Lo descubren |
|---|---|---|
| Todo activado | 95 % | 9 de 10 |
| Sin evaporación | 34 % | 0 de 10 |
| Sin rastro con distancia | 13 % | 0 de 10 |
| Sin exploración | 8 % | 0 de 10 |
La colonia sin exploración, la que era más eficiente en el puente, no descubre el atajo nunca. Todas siguen el rastro que ya conocen, y nadie se desvía lo bastante para encontrar algo mejor.
Es el dilema más famoso de la IA y de los negocios: exploración contra explotación. Explotar lo que ya sabes da resultados hoy; explorar es lo único que te permite enterarte de que hay algo mejor. Las hormigas lo resuelven con un poco de azar en cada decisión, y la evaporación hace el resto: el camino viejo se va borrando si deja de compensar.
Un dato curioso: las hormigas argentinas de verdad tampoco encuentran el atajo cuando se lo abren tarde. En el experimento de Goss y colaboradores (1989) la rama corta se abría 30 minutos después, y en más del 79 % de los ensayos no llegó a llevarse ni la mitad del tráfico: la rama larga había acumulado demasiada feromona. Cuando Dorigo pasó esto a algoritmo, una de las cosas que hizo fue subir la evaporación respecto a la biología. A veces la copia mejora al original.
7. El obstáculo: reencaminar sin que nadie lo ordene
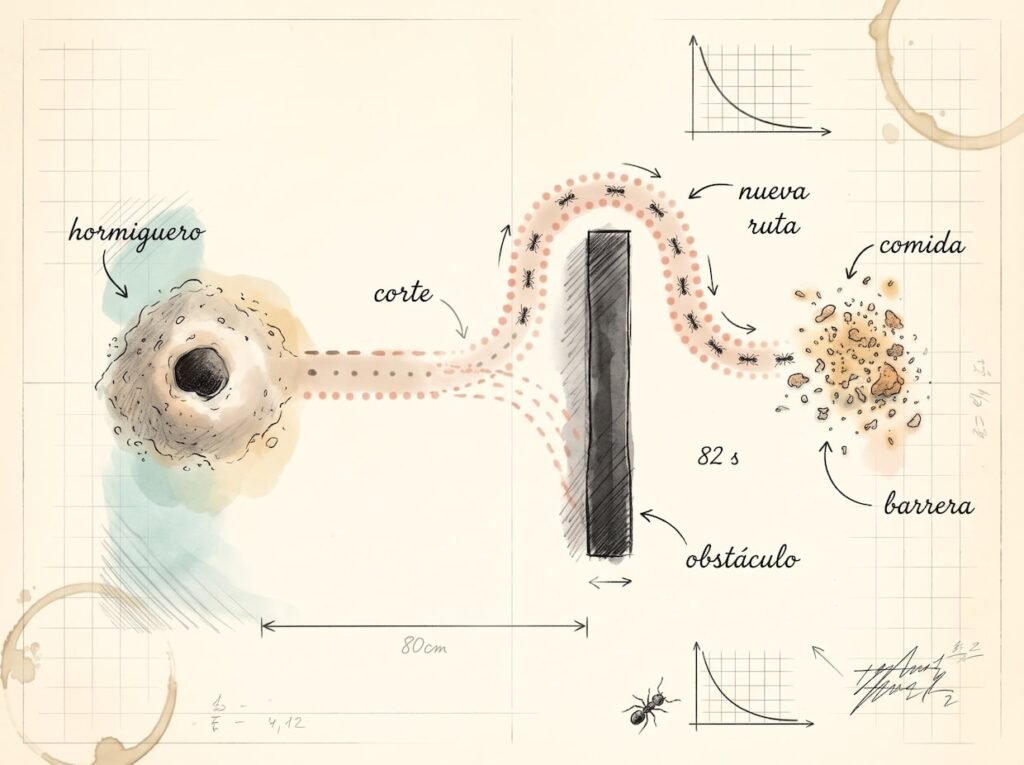
Tercer experimento, en campo abierto. Las hormigas forman una «autopista» de feromona hasta la comida. Cuando está formada, levanto una pared que la corta.
| Momento | Entregas por minuto |
|---|---|
| Antes del corte | 341 |
| Peor momento tras el corte | 119 |
| Recuperan el 80 % del ritmo en | 82 s de media |
Nadie recalcula nada. Las hormigas que chocan con la pared se desvían al azar, alguna encuentra el borde, su rastro es fresco y fuerte, y en poco más de un minuto la colonia tiene una ruta nueva.
Esta propiedad, adaptarse sola a los cambios, es justo la que hizo interesantes a las hormigas fuera de la biología. En mi póster aparecía AntNet (Di Caro y Dorigo, 1998), donde los routers mandan «hormigas» por la red y el tráfico se desvía solo cuando un enlace se satura. Y también el reparto con pedidos que llegan con el camión en ruta, que es lo que mido en la sección 9.
8. Del bicho al algoritmo: ACO
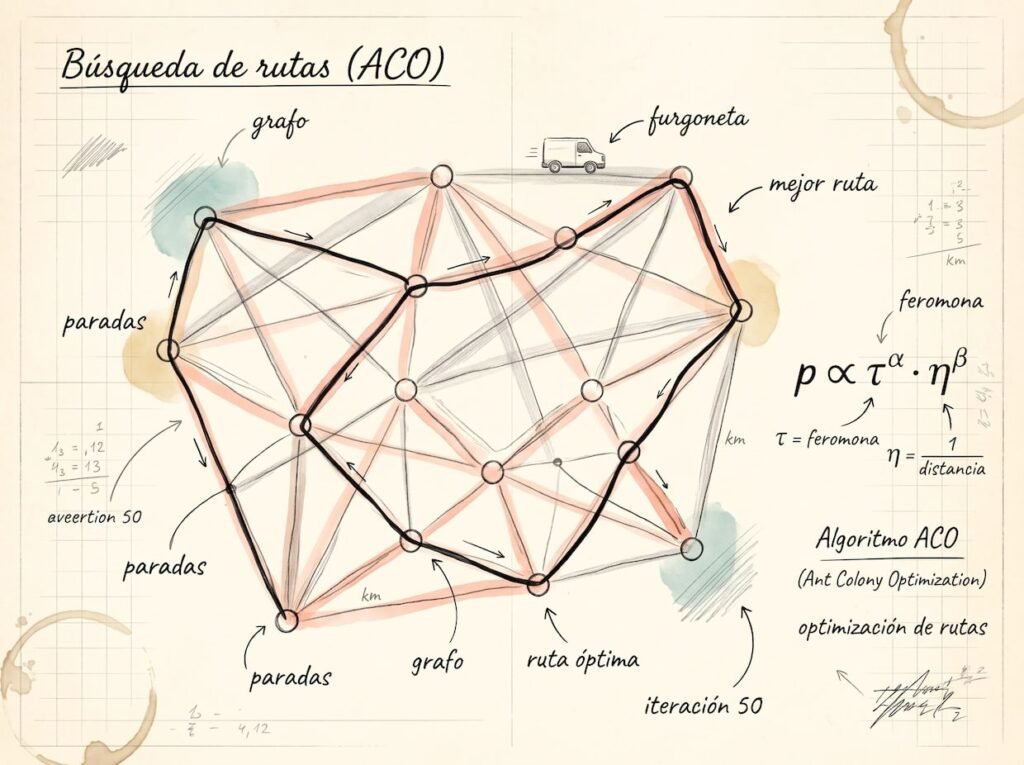
En 1992, Marco Dorigo presentó en su tesis el Ant System, el primer algoritmo de optimización por colonia de hormigas (Ant Colony Optimization, ACO). La idea fue quitarle a la hormiga todo lo que no hacía falta:
- Ya no hay suelo ni antenas: hay un grafo (paradas y tramos entre ellas).
- Cada hormiga construye una ruta completa, eligiendo en cada parada el siguiente tramo con esta probabilidad:
p(i→j) ∝ τ(i,j)^α · η(i,j)^βτ(tau) es la feromona del tramo: lo que ha aprendido la colonia.η(eta) es la heurística:1 / distancia. Lo que «ve» la hormiga a simple vista.αyβdicen cuánto pesa cada cosa. Es la misma regla de Deneubourg, con otra ropa.
En código:
for (let j = 0; j < n; j++) {
  w[j] = seen[j] ? 0 : this.tau[i][j] ** alpha * (1 / this.dist[i][j]) ** b;
  total += w[j];
}
// ruleta: cuanto más peso, más probable, pero cualquier tramo puede salir
let r = random() * total, next = -1;
for (let j = 0; j < n; j++) {
  if (!w[j]) continue;
  next = j;
  if ((r -= w[j]) <= 0) break;
}
Y al final de cada iteración, lo mismo que en el suelo: se evapora un poco y cada hormiga deja feromona en proporción inversa a la longitud de su ruta. Las rutas cortas dejan más:
for (const row of this.tau) for (let j = 0; j < row.length; j++) row[j] *= 1 - ACO.rho;
for (const t of tours) lay(t.tour, ACO.Q / t.length);
lay(this.best.tour, (ACO.elite * ACO.Q) / this.best.length); // la mejor hasta ahora refuerza extra
Es la pseudoimplementación de mi póster (compute_transition_probabilities, deposit_trail…), ahora funcionando.
El repartidor: hormigas contra el sentido común
El problema clásico es el del viajante (TSP): visitar N paradas y volver al inicio por la ruta más corta. Con 40 paradas hay más rutas posibles que átomos en el universo, así que no se pueden probar todas.
Lo comparo con lo que haría un repartidor con prisas: ir siempre a la parada más cercana (el «vecino más cercano»). 20 mapas aleatorios de 40 paradas, 20 hormigas por iteración:
| Método | Longitud media | Frente a la referencia* |
|---|---|---|
| Vecino más cercano | 4109 | +22 % |
| Vecino más cercano + 2-opt | 3541 | +5 % |
| Hormigas, 20 iteraciones | 3507 | |
| Hormigas, 200 iteraciones | 3399 | +0,8 % |
Hormigas sin mirar la distancia (β = 0) | 9113 | +170 % |
* Referencia: una colonia larga con pulido 2-opt (abajo lo explico). No es el óptimo demostrado, pero anda muy cerca.
Tres lecturas:
- Las hormigas hacen rutas un 17 % más cortas que el sentido común, y quedan a menos de un 1 % de la referencia.
- Sin heurística no van a ningún sitio. Una hormiga que no «ve» la distancia y solo sigue feromona es como una hormiga a ciegas en un mapa de 40 puntos: la feromona tarda muchísimo en contarle nada. El conocimiento local (η) y el colectivo (τ) se necesitan.
- En esta versión, la evaporación apenas cambia el resultado final (+1,5 % sin ella). Con refuerzo de la mejor ruta, la colonia converge igual. En el hormiguero era crítica porque el mundo cambiaba; aquí el mapa es fijo.
daemon_actions: el pulido que ya estaba en mi póster
Si miras la mejor ruta de las hormigas en el simulador, a veces tiene dos tramos que se cruzan. Un cruce nunca es óptimo: si le das la vuelta al trozo de ruta entre los dos tramos, siempre sale más corta. Eso es 2-opt, la mejora local más clásica del problema del viajante.
En la pseudoimplementación de mi póster había una línea que pasa desapercibida: daemon_actions(). Son acciones «centralizadas» que no hace ninguna hormiga, como pulir la mejor ruta de cada iteración. En el simulador es el botón Pulido 2-opt:
// daemon_actions: pulido local de la mejor ruta de la iteración
if (this.rules.pulido) {
  const it = tours.reduce((a, b) => (b.length < a.length ? b : a));
  it.length = this.twoOpt(it.tour);
}
Con pulido, la colonia llega a la referencia en 20 iteraciones en lugar de 200. Pero ojo, que es la parte honesta: con pulido casi todo da igual. Incluso sin mirar la distancia acaba en el mismo sitio, porque la búsqueda local hace gran parte del trabajo. Por eso viene apagado por defecto, para que se note el efecto de las demás reglas. Y por eso los ACO que se usan de verdad casi siempre van con búsqueda local: las hormigas encuentran la zona buena y el 2-opt remata. Que el vecino más cercano con 2-opt se quede un 5 % peor dice que las hormigas sí aportan algo.
9. Del póster a la furgoneta: rutas de reparto
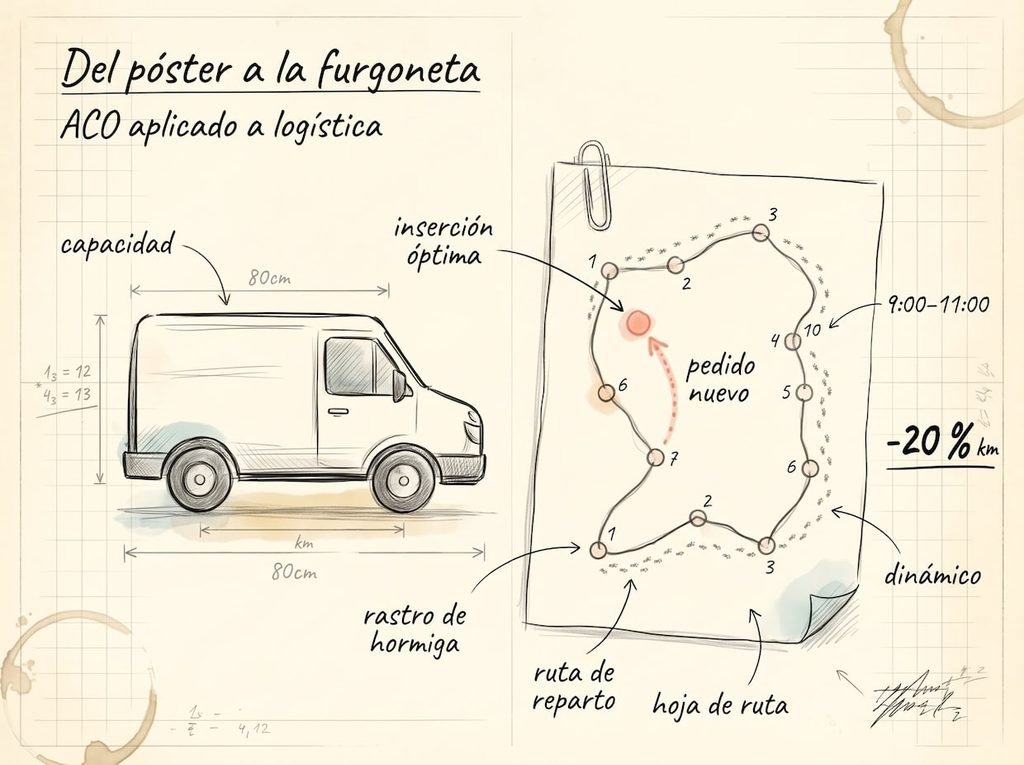
De todas las aplicaciones de las hormigas, me quedo con la que ya estaba en mi póster, porque es la que un builder se encuentra de verdad: decidir en qué orden visitar sitios. Repartidores, técnicos que van a domicilio, comerciales, rutas de recogida… Es el problema del viajante con ropa de trabajo.
Esto ya funcionó en producción
En el póster hablaba de dos programas suizos:
- AntRoute, para la planificación de rutas de la cadena de supermercados Migros.
- DyvOil, para Pina Petroli, una distribuidora de gasóleo de calefacción del Tesino con una flota de 12 camiones y miles de clientes. Ayudaba desde la previsión de pedidos hasta la replanificación con los camiones ya en la calle, con una variante de ACO (Ant Colony System) por debajo.
Los dos salieron de AntOptima, una empresa nacida del instituto IDSIA de Lugano, donde trabajaba el grupo de Dorigo. Es de los pocos casos en los que un algoritmo inspirado en bichos pasó del paper a mover camiones.
Lo que las hormigas hacen especialmente bien: rutas que cambian
DyvOil distinguía entre recorridos estáticos (calculados antes de salir) y dinámicos (llegan pedidos con el camión en ruta). Lo segundo es donde la colonia brilla, porque la feromona es memoria: cuando entra un pedido nuevo no hace falta empezar de cero. En el simulador, cada clic añade una parada con la optimización en marcha.
Medido: 35 paradas optimizadas, llegan 5 pedidos nuevos y damos 10 iteraciones más.
| Longitud | |
|---|---|
| Conservando lo aprendido (feromona) | 3506 |
| Empezando de cero | 3644 |
Un 4 % mejor con el mismo tiempo de cálculo. Cuando el problema cambia un poco, casi todo lo aprendido sigue valiendo. La nueva parada entra primero donde menos alarga la ruta, y luego las hormigas reajustan lo de alrededor.
Del juguete al problema real
Mi repartidor es la versión de libro: una furgoneta, sin horarios, sin capacidad. Un reparto real tiene restricciones: varias furgonetas, cuánto cabe en cada una, clientes que solo pueden de 9 a 11… Lo bonito de ACO es dónde entran: en el momento en que la hormiga elige el siguiente tramo. Si una parada no cabe o ya no se llega a tiempo, su peso es cero y no se puede elegir. Un esquema (no está en el simulador):
// Al construir la ruta: solo son elegibles las paradas que respetan las restricciones
w[j] = seen[j] || carga + pedido[j] > capacidad || llegada(i, j) > cierre[j]
  ? 0
  : tau[i][j] ** alpha * (1 / dist[i][j]) ** beta;
El resto del algoritmo no cambia. Compáralo con reescribir un modelo matemático cada vez que el cliente se inventa una restricción nueva.
Siendo honesto: ¿usaría ACO hoy?
Para un reparto serio, hoy empezaría por un solver de rutas ya hecho (Google OR-Tools, por ejemplo), que combina heurísticas de construcción con búsqueda local y resuelve muy bien los casos típicos. Pero ACO tiene sitio cuando:
- El problema cambia mientras lo resuelves: pedidos que entran, calles cortadas, un camión que se retrasa. La feromona aguanta los cambios.
- Las restricciones son raras y no encajan en las plantillas del solver. En ACO basta con poner a cero lo que no se puede elegir.
- Quieres algo pequeño y tuyo: el repartidor completo cabe en unas 180 líneas sin dependencias, y el vecino más cercano te deja un ~20 % de kilómetros encima de la mesa.
Para un SaaS de rutas, visitas o turnos, lo razonable es empezar con vecino más cercano + 2-opt (un 5 % peor que la referencia y trivial de programar) y pasar a una colonia cuando los pedidos dinámicos o las restricciones raras lo pidan.
10. Lo que se lleva un builder
| Si necesitas… | Coge de la colonia… |
|---|---|
| coordinar muchos agentes sin un servidor central | estigmergia: que se comuniquen escribiendo en un estado compartido (sección 2) |
| que un sistema se adapte solo cuando el mundo cambia | evaporación: olvidar a propósito (secciones 5 y 7) |
| no quedarte atascado en la primera solución que funciona | exploración: un poco de azar en cada decisión (sección 6) |
| rutas, repartos, secuencias u horarios «bastante buenos» rápido | ACO: feromona + heurística, rematado con búsqueda local (sección 8) |
| que los cambios pequeños no te obliguen a recalcular todo | conservar la feromona entre ejecuciones (sección 8) |
Y la lección que más me llevo, otra vez: los sistemas emergentes son frágiles y hay que medirlos. Un cambio de 13 a 14 px en la distancia de las antenas hacía que el atajo se descubriera en 5 de 5 semillas o en 0 de 5. Sin un modo headless que repite el experimento con 10 semillas, este post estaría lleno de capturas bonitas y conclusiones falsas.
Resumen
| Técnica | De dónde viene | Qué aporta |
|---|---|---|
| Estigmergia | Grassé, 1959 (termitas) | comunicación a través del entorno |
Regla de elección (k + x)^n | Deneubourg y Goss, 1989–90 | decisiones probabilísticas que se refuerzan |
| Evaporación | biología, reforzada por Dorigo | olvidar para poder adaptarse |
| Ant System (ACO) | Dorigo, 1992 | optimizar rutas con feromona + heurística |
| AntRoute / DyvOil | AntOptima (IDSIA) | ACO en producción: rutas de camiones |
Lo que en el póster de la carrera era un dibujo, ahora se puede tocar: cierra caminos, abre atajos, apaga la evaporación y mira qué pasa.
👉 Prueba el hormiguero aquí: empieza por el puente doble, pulsa «2» para quitar el rastro con distancia y compara. Luego ve al repartidor y haz clic para añadir pedidos con el reparto en marcha.
Y una que me guardo para otro día: en el post de 2019 proponía usar las hormigas en una web, para encontrar el camino hasta la compra. Visto hoy, eso es estigmergia pura: los usuarios son las hormigas, y sus recorridos dejan feromona en los enlaces que llevan a comprar. Da para un experimento propio.

1 comentario en «Creo un hormiguero que calcula rutas de reparto»
Los comentarios están cerrados.